




商品詳情
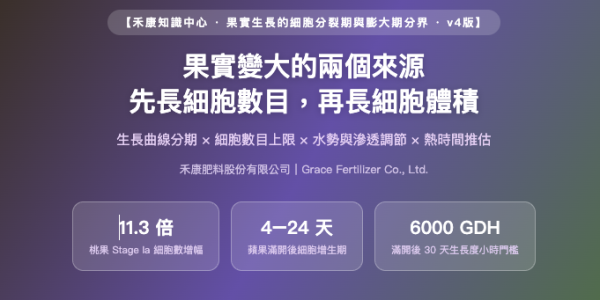
果實變大的兩個來源
先長細胞數目,再長細胞體積
生長曲線分期 × 細胞數目上限 × 水勢與滲透調節 × 熱時間推估
禾康肥料股份有限公司|Grace Fertilizer Co., Ltd.
⏱ 一分鐘重點
- 果實體積增加有兩個來源:細胞數目增加與既有細胞膨大,前者過了就補不回來。兩期管理重點不同。
- 桃果階段 Ia 細胞數增約 11.3 倍、面積僅增約 3.5 倍;階段 Ib 則細胞數僅增約 1.1 倍、面積增約 9.2 倍 (Famiani et al., 2020)。
- 'Gala' 蘋果的細胞增生集中在滿開後 4 至 24 天,之後退出增生 (Malladi & Hirst, 2010)。
- 滿開後 30 天累積生長度小時超過約 6000,發育速率明顯上升,採收基準日提前 (Lopez & DeJong, 2008)。
- 台灣情境常見誤區:用日曆天數推估採收期。發育期隨溫度伸縮,基準溫度與上限截斷設定不同會算出不同結果,宜以熱時間並列判讀。
- 禾康產品對應:禾康2號高鉀(鉀位滲透調節)、禾康鈣勇(鈣位細胞壁結構)搭配 百倍強3號 於分裂期打底。
兩個來源:生長曲線怎麼分期
果實體積增加從來不是一件事,而是兩件事先後接棒:先把細胞數目做出來,再把每顆細胞撐大。看懂這條接棒線,是後面所有判讀的起點。
多數果實的體積對時間畫出來是 S 型曲線;核果類與部分漿果則呈雙 S 型,中間夾一段生長趨緩的平台期。以石果類為例,果肉生長常分三個階段:階段 I 快速生長、階段 II 趨緩、階段 III 再次快速生長;梨呈單 S 型,桃與草莓呈雙 S 型,原因常被歸於同化物在此期被導向內果皮木質化或色素合成 (Famiani et al., 2020)。
關鍵在於:細胞分裂與細胞膨大並不平均散在整條曲線上。桃在階段 Ia 以細胞數目增加為主,階段 Ib 轉為以細胞面積增加為主;櫻桃的細胞分裂多發生在階段 I 前半,細胞擴大多發生在後半。同樣一段「看起來在長大」的時間裡,果實內部正在做的事可能完全不同。
必須強調的是,各物種、各品系的分裂期長度與細胞數目不可互比,下表逐列標明物種,請勿跨列換算。本篇不作機型、品系與選購推薦;規格與供應請洽禾康官網產品頁或原廠技術資料。
| 物種(逐列不可互比) | 細胞分裂期的時程標記 | 出處 |
|---|---|---|
| 番茄 | 滿開後 5–10 天全果 CDK 活性最高,凝膠組織約 15 天後消退 | Joubès et al., 1999 |
| 蘋果 'Gala' | 細胞增生集中於滿開後 4–24 天 | Malladi & Hirst, 2010 |
| 蘋果(已授粉) | 滿開後 8–11 天細胞數增幅逾五成,約 24 天退出增生 | Malladi & Johnson, 2011 |
| 桃 | 階段 Ia 細胞數增約 11.3 倍,階段 Ib 僅約 1.1 倍 | Famiani et al., 2020 |
| 寄接梨 | 細胞分裂約於滿開後 25–45 天結束,果徑約 16.6 公釐 | 徐信次、黃和炎, 2000 |
分裂期:細胞數目決定體積上限
分裂期做出多少細胞,就等於替這顆果實畫好了體積的天花板;膨大期只能決定這個天花板被實現到什麼程度。
蘋果的細胞增生在著果後重新啟動,滿開後 8 至 11 天之間細胞數增幅就超過五成,到約 24 天退出增生程序;未受粉的花在第 11 天的細胞數比已受粉者低約 1.9 倍 (Malladi & Johnson, 2011)。番茄的研究則顯示,最終鮮重的多數來自開花後 10 至 30 天期間生成的細胞,因為這批細胞數目最多;更早生成的細胞雖然個別體積較大,但數目有限 (Baldazzi et al., 2013)。
兩個乘數由不同時期的不同條件決定:前者由著果後數週的細胞增生決定,分裂期結束後就補不回來;後者由水勢梯度與同化物供應決定,可在膨大期持續調整。要比較兩批果實的差距,請把差距拆回這兩個乘數,結果以百分比表示。
這條關係式的實務意義是:同一園區兩批果實的大小差距,可能來自細胞數目不同,也可能來自單一細胞撐得不夠大,兩者的補救時機完全不同。'Gala' 的大果型芽變株在滿開 20 天時徑向細胞直徑高出約 24%、採收時高出約 15%,作者推估細胞體積可因此增加約五成,但最終細胞數目與原品系並無明顯差異 (Malladi & Hirst, 2010)。可見「大果」未必等於「細胞多」,判讀時務必拆層。
膨大期:水勢梯度與滲透調節
膨大期的體積增加,絕大部分是水被拉進細胞的結果。要讓水進得來,細胞得先把溶質累積起來,把自己的水勢壓低。
細胞壁要發生不可逆伸展,膨壓必須先超過一個臨界值,之後伸展速率隨兩者差額上升;水勢可拆為膨壓與滲透勢,滲透勢有利水分流入,膨壓則限制進一步伸展 (Gariglio et al., 2024)。同篇整理的量測顯示,甜櫻桃膨壓進入階段 III 後由 350 kPa 降到 25 kPa;歐洲李由 0.33–0.35 MPa 降到採收時 0.02 MPa。數字分屬不同物種與量測基準,一律並列不換算。
溶質從哪裡來?葡萄果粒含水約 75–85%,細胞膨大靠溶質累積帶動水分流入;鉀是果粒含量最高的陽離子,細胞質濃度約 100–200 mM,被認為在糖分尚低的轉色前參與推動細胞膨大 (Rogiers et al., 2017)。鈣是另一條路:鈣在韌皮部移動性低,果實主要靠木質部取得,而果實蒸散在著果期達高峰後下降,多數鈣在發育早期送入;去酯化果膠可與鈣形成交聯膠體,牽動細胞壁結構與水分關係 (Hocking et al., 2016)。
番茄模擬也呼應這個比重:採收時鮮重 90–130 公克、乾重僅約 4–6 公克;缺水使鮮重下降約 25%、乾物下降約 17%,遮蔭則分別約 10% 與 15% (Baldazzi et al., 2013)。水分穩定度在膨大期的權重往往高於同化物。
反作用對照:看似合理,實則反過來
兩期分界最常被誤讀的地方,不是技術太深,而是常識太順。以下五種作法在田間很常見,卻會把結果推往反方向。
最該拆解的是「用日曆天數推估採收期」。桃在滿開後 30 天累積的生長度小時超過約 6000 時,發育速率明顯上升,使採收基準日比門檻以下年份提前約 15 天;以滿開日本身推估只能解釋基準日變異的約 12%,改用生長度小時可解釋約 63% (Lopez & DeJong, 2008)。
更麻煩的是熱時間算法不止一種。基準溫度常落在 32–55 °F,上限門檻逐作物不同;簡單平均法不設上限,門檻替代法把超出範圍的溫度拉回門檻值,正弦法估算日溫度曲線下的面積。同一天資料(基準 50 °F、最低 40 °F、最高 90 °F、上限 86 °F)以簡單平均法得 15 度日、門檻替代法得 18 度日,各法通常不可互換 (Andrews et al., 2021)。換個基準溫度或換個截斷方式,就會算出不同結果。
| 常見作法 | 為什麼會反過來不利 | 替代做法 |
|---|---|---|
| 等果實看得出來才加強供應 | 肉眼可辨時分裂期多已結束,細胞數目已釘死 | 以滿開日起算,分裂期內即建立抽樣與穩定供應 |
| 用日曆天數推估採收期 | 發育期隨溫度伸縮,暖年與冷年同天數進度不同 | 熱時間與天數並列,明寫基準溫度與截斷方式 |
| 分裂期就把供應量一次拉高 | 此期限制多在細胞增生程序本身,過量轉為營養生長競爭 | 分裂期求穩不求多,量能留到膨大期再加 |
| 膨大期灌水忽多忽少 | 膨壓與滲透勢反覆擺盪,伸展速率斷續 | 小量多次維持根域水分帶,波動壓在窄幅內 |
| 只看單果大小不看細胞數上限 | 大果可能來自細胞大而非細胞多,錯層判讀會投錯時期 | 把差距拆回細胞數與單一細胞體積兩個乘數 |
本章五列都屬判讀框架,不作機型、品系與選購推薦;規格請洽禾康官網產品頁或原廠技術資料。
田間實務:兩期的記錄與節奏
兩期分界要能用,靠的不是記住別人的天數,而是在自己園區把起算點、抽樣節點與供應節奏固定下來。
溫度不只伸縮時程,也改寫兩期的內容。番茄單穗局部加溫試驗顯示,加溫縮短果實生長期並使最終果實變小;開花後 7 天內加溫者,變小主要與果皮細胞體積較低有關,且雖然果皮細胞層數增加,總細胞數並未改變 (Fanwoua et al., 2012)。番茄模擬中,開花後約 20 天的膨大中期施加逆境對果重影響最大,更晚期則影響有限 (Baldazzi et al., 2013)。源庫關係在兩期的角色也不同:分裂期瓶頸偏向細胞增生程序與早期配額,膨大期瓶頸偏向水分與溶質供應的穩定度。
| 作業節點 | 觀察指標 | 記錄方式 |
|---|---|---|
| 滿開日 | 全園約八成花朵開放之日 | 逐區逐批登記,作為兩期時程的起算點 |
| 分裂期內 | 果徑與果形變化、落果情形 | 固定標記果,每 3–5 天量測並記錄環境溫度 |
| 兩期交界 | 果徑增幅由加速轉為線性 | 以曲線轉折點標記,對照熱時間累積值 |
| 膨大期內 | 根域水分帶、果實膨大速率 | 定點感測加人工抽樣,記錄灌水起停與水量 |
| 採收前 | 單果重與果徑分布 | 逐批抽樣,回頭核對分裂期的記錄 |
界線有三點:本篇不替代現場試作與逐批抽樣;不替代土壤與植體檢測報告判讀;各作物的具體時程與品種差異請依該作物栽培曆與當地試驗。品種文獻常列的欄位,本篇一律視為田間表現差異,不作品種推薦也不比較品種。訊息物質層面的生理討論請見官網《植物激素完全解析》,本篇不涉處方。作業衛生請見既有《溫室衛生管理協定》。
禾康方案精準對接
核心思路:供應節奏對準兩期不同瓶頸——分裂期求穩、膨大期求順。兩期供應節奏屬營養管理,不宣稱改變果實的遺傳上限,不作功能宣稱。同品類在售品項只並列不比較;本篇不作機型、品系與選購推薦。
分裂期:求穩不求多
- 滿開後以 禾康即溶肥 3 號(10-32-18 高磷配方) 低量穩定供應
- 轉入膨大前改以 禾康即溶肥 4 號 平衡氮鉀
- 分裂期另有在售 百倍強 3 號(新液態配方) 可併行,哈密瓜與水蜜桃等果樹農友愛用
🌱 簡易版(新手速成)
① 判斷
記下滿開日,之後每 3–5 天量果徑。增幅由加速轉為近乎線性,就是從分裂期走進膨大期。
② 選型
分裂期偏磷與穩定低量,膨大期偏鉀與水分穩定,早期顧鈣位。同品類只並列不比較。
③ 時機
別等看得出來才動手。鈣趁果實蒸散仍高的早期,鉀在膨大期跟上,兩者時機錯開。
④ 搭配
有機打底加穩定灌水是底盤。熱時間與天數並列推估採收期,寫明所用基準溫度。
常見問答
Q1. 怎麼判斷果實走進膨大期?
以滿開日起算,固定標記果每 3–5 天量果徑。增幅由加速轉為近乎線性,多對應進入膨大期。物種差異大,請以自家曲線對照熱時間累積值為準。
Q2. 兩期的供應節奏可否取代農藥與防治作業?
不行。營養管理屬養分供應,不是植物保護作業,本篇也不宣稱防治或治療病害。供應節奏只影響細胞數目與體積的形成條件;植物保護請依核准用法與專業建議執行。
Q3. 分裂期錯過了,膨大期能補回來嗎?
補不回來。細胞數目在分裂期結束時定下來,膨大期只能決定既有細胞被撐到多大。補救重點在下一批與下一季,而非已過分裂期的果實。
Q4. 兩期節奏管得好,是不是就等於防病?
不是。供應節奏管的是果實體積的形成條件,與病害管理是兩回事,不可互相替代。本篇只寫生理與物理機制,不宣稱任何防治效果。
Q5. 為什麼不建議用日曆天數推採收期?
發育期隨溫度伸縮,暖年與冷年同天數的進度不同。熱時間算法也不止一種,基準溫度與上限截斷不同就算出不同結果,故須寫明算法。
Q6. 鈣與鉀在兩期的角色差在哪?
就營養角色而言,鈣參與細胞壁結構與果實硬度,韌皮部移動性低,主要靠木質部於早期送入;鉀參與滲透調節與溶質累積,膨大期權重較高,兩者時機錯開。
📚 參考來源
國際技術與學術文獻
- Famiani, F., Bonghi, C., Chen, Z.-H., et al., 2020. Stone Fruits: Growth and Nitrogen and Organic Acid Metabolism in the Fruits and Seeds—A Review. Frontiers in Plant Science, 11, 572601. — 石果類曲線與兩期分工
- Bertin, N., 2005. Analysis of the tomato fruit growth response to temperature and plant fruit load in relation to cell division, cell expansion and DNA endoreduplication. Annals of Botany, 95(3), 439–447. — 溫度與結果量對兩期的牽動
- Joubès, J., Phan, T.-H., Just, D., et al., 1999. Molecular and Biochemical Characterization of the Involvement of Cyclin-Dependent Kinase A during the Early Development of Tomato Fruit. Plant Physiology, 121(3), 857–869. — 番茄分裂期時程標記
- Malladi, A., & Hirst, P. M., 2010. Increase in fruit size of a spontaneous mutant of 'Gala' apple (Malus×domestica Borkh.) is facilitated by altered cell production and enhanced cell size. Journal of Experimental Botany, 61(11), 3003–3013. — 細胞數與細胞體積拆層
- Malladi, A., & Johnson, L. K., 2011. Expression profiling of cell cycle genes reveals key facilitators of cell production during carpel development, fruit set, and fruit growth in apple. Journal of Experimental Botany, 62(1), 205–219. — 蘋果細胞增生的起訖
- Gariglio, N., Reig, C., & Agustí, M., 2024. Unraveling water relations in growing fruit: insights from the epidermal growth regulation hypothesis. Frontiers in Plant Science, 15, 1495916. — 膨壓臨界值與水勢拆解
- Rogiers, S. Y., Coetzee, Z. A., Walker, R. R., et al., 2017. Potassium in the Grape (Vitis vinifera L.) Berry: Transport and Function. Frontiers in Plant Science, 8, 1629. — 鉀的滲透調節營養角色
- Hocking, B., Tyerman, S. D., Burton, R. A., & Gilliham, M., 2016. Fruit Calcium: Transport and Physiology. Frontiers in Plant Science, 7, 569. — 鈣的木質部輸送與早期窗口
- Baldazzi, V., Pinet, A., Vercambre, G., et al., 2013. In-silico analysis of water and carbon relations under stress conditions. A multi-scale perspective centered on fruit. Frontiers in Plant Science, 4, 495. — 水分與同化物權重比較
- Lopez, G., & DeJong, T., 2008. Using growing degree hours accumulated thirty days after bloom to help growers predict difficult fruit sizing years. Acta Horticulturae, 803, 175–180. — 熱時間優於日曆天數
- Fanwoua, J., de Visser, P. H. B., Heuvelink, E., et al., 2012. Response of Cell Division and Cell Expansion to Local Fruit Heating in Tomato Fruit. Journal of the American Society for Horticultural Science, 137(5), 294–301. — 加溫對兩期的分別作用
- Andrews, N., Coop, L., Stoven, H., Noordijk, H., & Heinrich, A., 2021. Vegetable Degree-day Models: An Introduction for Farmers and Gardeners (EM 9305). Oregon State University Extension Service. — 基準溫度與截斷方式差異
- Hirst, P. M., 2019. How Apple Fruit Size Is Determined and Affected. Apples Extension, Purdue University. — 滿開後前五週的關鍵窗口

