




商品詳情
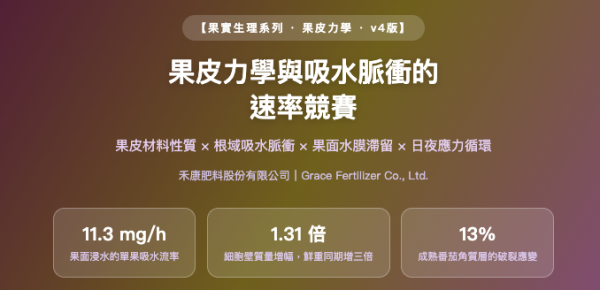
果皮力學與吸水脈衝的
速率競賽
果皮材料性質 × 根域吸水脈衝 × 果面水膜滯留 × 日夜應力循環
禾康肥料股份有限公司|Grace Fertilizer Co., Ltd.
五方區隔宣告:本篇只寫「速率競賽與材料力學層」。
① 既有《果實裂果生理》是生理層與裂果類型層;定義與分類一律內鏈該篇,一句即止。
② #54《果實日燒與遮蔽反射資材》是同一器官的熱與輻射失效模式,本篇是水分與力學失效模式,兩篇互為姊妹題。
③ #26《作物熱逆境生理與夏季降溫》是冠層與全株熱平衡層。
④ #35《灌溉起訖時間與乾燥回落》與 #36《介質袋 WC-EC 感測與灌溉決策》是灌溉起訖與介質含水量量測層,本篇只承接果實端的壓力後果。
⑤ #90《果實生長的細胞分裂期與膨大期分界》是體積形成層,本篇是體積增加過頭之後的力學失效層;《鈣缺乏完全防治指南》是單一養分生理層,本篇只寫力學後果。
限定句:本篇談鈣與鉀,只寫營養角色,不宣稱防治裂果。
⏱ 一分鐘重點
- 果皮會不會破,取決於兩個速率誰快:果肉吸水使膨壓上升的速率,對上果皮延展與角質層增厚的速率。
- 甜櫻桃浸於去離子水的吸水流率平均 11.3 mg/h,浸於自身果汁僅 1.4 mg/h (Winkler et al., 2019)。
- 甜櫻桃細胞壁質量只增 1.31 倍,同期鮮重約增三倍 (Schumann et al., 2020)。
- 重水示蹤顯示水在一小時內經微裂隙進入,完整果皮偵測不到通量 (Grimm et al., 2019)。
- 台灣情境常見誤區:把久旱後第一次大水當補救,實際上製造了最陡的吸水脈衝。
- 禾康對應:膨大期用禾康甜鉀多、禾康即溶肥 1 號穩住節奏,著色期轉禾康即溶肥 2 號,鈣位以禾康鈣強補位,只寫營養角色。
兩個速率的競賽:膨壓上升 vs 果皮延展
果皮破裂不是某一時刻的事件,而是兩條時間曲線交會的結果。果肉吸水使內部膨壓上升,尺度是分鐘到小時;果皮延展與角質層沉積提供的承受能力,尺度是天到週。快的那條逼近慢的那條,殘餘應變就累積。
果實體積增加,表面積隨之擴張,果皮必須同步延展,問題在供料速度。甜櫻桃研究指出,細胞壁質量從第二期到成熟只增加 1.31 倍,而鮮重由每果約 3.4 公克增至約 10.0 公克;同期壁材膨潤量增加 1.3 至 1.9 倍,材料反而更軟 (Schumann et al., 2020)。角質層沉積在中後期趨近停滯,供料曲線與體積曲線於是分家。
另一端累積極快。水浸甜櫻桃約 200 分鐘後首次偵測到微裂隙,裂口體積隨後呈指數成長;裂隙區外中果皮細胞在微裂隙出現前體積增加 1.3 倍,擴展為巨裂後再增 1.7 倍,對照區幾乎不變 (Grimm et al., 2019)。破裂是局部細胞爆破帶動的連鎖,不是整顆均勻漲破。
競賽判準(線性化寫法)
果皮應變增率 dε/dt ≈ (1/3)·(1/V)·(dV/dt)
當 dε/dt 長時間大於果皮可提供的承受增率 dεcap/dt,殘餘應變逐步累積;趨近材料的破裂應變 εf 時,局部進入失效區。
操作意義:槓桿有三個——壓低 dV/dt 尖峰、避免 εf 在高溫被壓低、讓 dεcap/dt 在膨大早期有足夠養分。
根域水勢突變如何製造吸水脈衝
吸水脈衝來自根域水勢的階梯式變化。久旱後一次大水、降雨入滲、夜間蒸散趨緩後的根壓回升,都會在短時間內拉開莖與果實的水勢梯度,果實成為水的終點站。
溫室番茄的水流量測給出日夜圖像。低蒸氣壓差下莖水勢約 −0.28 MPa、果實約 −0.4 MPa,梯度穩定;高蒸氣壓差時上位葉降到約 −0.98 MPa(低蒸氣壓差約 −0.65 MPa),正午莖果梯度被壓縮甚至逆轉,質外體水流進入果實的峰值則落在夜間 (Guichard et al., 1999)。白天果實其實在失水收縮,夜間才是膨壓抬升的主場。
| 時段 | 蒸散與水勢態勢 | 果實端後果 | 可操作的點 |
|---|---|---|---|
| 日出至上午 | 蒸散啟動,莖水勢降 | 由增轉減,膨壓回落 | 起灌不宜過早過猛 |
| 正午高輻射 | 梯度壓縮,可能自果實回抽 | 果實收縮,果皮暫時鬆弛 | 降低單次給液量 |
| 午後至日落 | 蒸散趨緩,梯度重開 | 體積回補,膨壓爬升 | 收灌時機定夜間起點 |
| 夜間 | 質外體水流達峰,根壓回升 | 膨壓升幅最大,應變累積最快 | 夜間濕度與含水量 |
| 久旱後首次大水 | 根域水勢階梯式抬升 | 脈衝最陡,爆破風險升高 | 分次回水、拉長斜率 |
延伸單位的觀察一致:乾旱後強降雨或一次重灌會在短時間把果內壓力推高,果皮在成熟過程中本就逐漸變弱 (Sánchez & Butzler, Penn State Extension);加州經驗則指過量灌溉與長時間泥濘土壤會把多餘水分送進樹體再分流到果實 (UC Statewide IPM Program)。台灣蓮霧試驗提供門檻參考:30 公分深埋張力計,高於 25 cbar 起灌、15 cbar 收灌,裂果率低於慣行漫灌(林永鴻,高雄區農業改良場研究彙報)。
果面水膜與果皮途徑吸水:第二條獨立路徑
根域不是水進入果實的僅有入口。果面凝結的露水、灌溉飄濺、雨水滯留,都能讓水經果皮途徑進入果肉。其驅動力不是莖果水勢梯度,而是果面水膜與果皮內側的濃度差,可在根域正常時單獨發生。
甜櫻桃浸於去離子水平均吸水 11.3 mg/h,浸於自身果汁僅 1.4 mg/h;果肉滲透勢約 −2.6 MPa、果皮約 −1.4 MPa,而吸水量與滲透勢相關性偏弱(r² 僅 0.12 至 0.23),顯示通透構造比滲透勢更能解釋差異 (Winkler et al., 2019)。重水示蹤定位入口:水在一小時內經微裂隙進入,完整果皮偵測不到通量,花柱疤區滲入量高於果梗凹區,巨裂頻度亦以該區最高 (Grimm et al., 2019)。草莓量測則指出,離體濕潤果實在萼片區吸水量可觀 (Hurtado & Knoche, 2023)。
| 比較項 | 根域吸水路徑 | 果面途徑吸水 |
|---|---|---|
| 驅動力 | 莖與果實的水勢梯度 | 果面液態水與果皮內側濃度差 |
| 進入位置 | 果梗維管束,全果均勻 | 微裂隙、花柱疤、萼片座、果點 |
| 時間尺度 | 數小時至整夜 | 水膜存在期間,分鐘級即開始 |
| 關鍵氣象量 | 土壤或介質水勢、蒸氣壓差 | 露點溫差、果溫、水膜滯留時間 |
| 可操作點 | 灌溉起訖與分次策略 | 通風除濕、避免冠層噴灌 |
水膜滯留時間是這條路徑最實用的控制變量。果溫低於空氣露點時果面凝結,回升到露點以上才轉為蒸發;遮蔽、夜間保溫、通風換氣都在改寫這兩個時點。反覆潤濕會加劇微裂隙,微裂隙又提高通透性,形成自我強化的回路——這也是多次噴施若施至流滴會延長濕潤時間的原因。
果皮的材料力學量:模數、破裂應變與角質層
速率競賽要能談,先要有可量測參數。離體角質層與果皮的雙軸拉伸試驗提供四個量:彈性模數、破裂應力、破裂應變,以及角質層面質量與微裂隙密度。
番茄離體角質層在授粉後 55 天的楊氏模數約 1000 MPa、破裂應力約 52 MPa、破裂應變約 13%,厚度約 4.4 至 7.4 µm。第一期(15 至 35 天)角質層變軟、延展性上升,由內褶發育造成;第二期(35 至 55 天)隨酚類累積而硬化,模數與破裂應力上升、破裂應變下降 (Benítez et al., 2021)。甜櫻桃整層果皮數值小得多,彈性模數約 16.7 至 21.7 MPa、破裂壓力約 62 至 73 kPa;果溫由 5°C 升至 35°C 時模數與破裂壓力同步下降 (Brüggenwirth & Knoche, 2016)。
| 材料力學量 | 物理意義 | 發育期走向 | 牽動因子 |
|---|---|---|---|
| 彈性模數 E | 同樣應變所需的應力 | 番茄第二期上升 | 酚類、壁材膨潤、果溫 |
| 破裂應力 | 可承受的最大應力 | 隨成熟先升後降 | 多醣骨架、黃酮、厚度 |
| 破裂應變 εf | 破裂前可拉伸的比例 | 第一期升、第二期降 | 蒸散狀態、膨壓、果溫 |
| 角質層面質量 | 單位面積的供料量 | 中後期趨近停滯 | 沉積與表面擴張之比 |
| 微裂隙密度 | 通透性與裂紋起始點 | 隨應變與潤濕升高 | 殘餘彈性應變、水膜滯留 |
角質層沉積速率低的後果有實證。芒果品種對照顯示,沉積趨緩至面質量近乎恆定者,角質層較薄、切離與脫蠟時釋放的彈性應變較大、勁度較低、較低應變即失效 (Athoo et al., 2021)。葡萄補上另一半:品種間角質層厚度差超過兩倍卻不足以解釋裂開傾向;鬆化細胞壁會提高裂開機率並加速進程,硬化處理則相反 (Chang & Keller, 2021)。厚度不等於強度,果皮與表皮細胞壁是串聯承力的兩層。
日夜溫差的應力循環、體積脈動與鈣鉀的營養角色
果實每天都在做一次低週波疲勞試驗。白天收縮、夜間膨大,果皮承受週期性應變;勁度與破裂條件又隨果溫改變。溫差愈大,振幅愈大。
溫度效應是雙向的。果溫升高時果皮彈性模數與破裂壓力同步下降,彈性應變與潛變應變在最高溫區間顯著增加 (Brüggenwirth & Knoche, 2016)。午後高果溫時段,果皮正處承受能力最低的狀態;此時若疊加灌溉脈衝或冠層噴灌造成的果面潤濕,兩個不利條件就重疊。夜間相反:果溫低、質外體水流達峰,膨壓升幅最大,果皮以較高勁度承接最大體積增量。
| 相位 | 果溫與果皮狀態 | 體積脈動 | 風險組合 |
|---|---|---|---|
| 上午升溫 | 模數開始下降 | 由膨脹轉收縮 | 露水未乾就灌溉 |
| 正午高溫 | 模數與破裂壓力最低 | 收縮幅度最大 | 高果溫疊加大量給液 |
| 午後降溫 | 勁度回升 | 體積回補開始 | 收灌過晚拉高起點 |
| 夜間低溫 | 勁度高、延展性低 | 膨壓升幅最大 | 高濕度加含水量高 |
養分在這圖像裡的位置要說清楚。鈣的角色是細胞壁交聯:果膠去甲酯化後與鈣形成蛋盒結構,提高壁材勁度。甜櫻桃量測顯示細胞壁彈性模數隨氯化鈣濃度升高至約 3 mM 前持續上升,膨潤量由約 3.0 µm 降至約 1.9 µm (Winkler et al., 2024)。鉀的角色是滲透調節與糖分累積的配套:滲透勢本身是吸水驅動力的一部分 (Winkler et al., 2019),鉀位供應牽動糖分運移與滲透勢的形成節奏。限定句:以上只寫營養角色,不宣稱防治裂果。
禾康方案精準對接
依速率競賽的三個槓桿——壓低體積增率尖峰、維持果皮承受增率、顧好滲透勢節奏——對應四套營養方案,只寫營養角色。
膨大早期:壁材供料窗口
著色期:鉀位與滲透勢節奏
根域機能與介面輔助
- 藻禾康用於逆境時段補充,禾康 EDTA 綜合微量補位微量養分。
- 禾康甲殼素(SAR 誘導型資材)與禾康蟹殼粉納入營養規劃。
- 限定句:皆為營養與資材角色,肥料不是農藥,不作防病敘述。
🌱 簡易版(新手速成)
① 判斷
看兩件事:介質或土壤含水量的日變幅,以及果面早晨是否還有水膜。愈平穩愈安全。
② 選型
膨大早期用禾康即溶肥 1 號與禾康甜鉀多;著色期換禾康即溶肥 2 號;鈣位用禾康鈣強或禾康鈣勇硝酸鈣。
③ 時機
養分節奏要早於膨大高峰。久旱後務必分次回水,不要一次把根域水勢拉到飽和。
④ 搭配
營養方案搭配通風除濕與避免冠層噴灌,縮短果面水膜滯留;只寫營養角色,不宣稱防治裂果。
常見問答
Q1. 久旱之後要灌水,怎麼分配才不會製造吸水脈衝?
把一次大水拆成多次小量,讓根域水勢回升斜率變緩。蓮霧試驗以 30 公分深張力計 25 cbar 起灌、15 cbar 收灌,裂果率低於慣行漫灌,可作門檻起點。
Q2. 果面結露和根域吸水,哪一條比較要緊?
兩條是獨立路徑,不能互相替代。根域路徑量級大、時間長;果面途徑在水膜存在的分鐘級就啟動,入口集中在微裂隙與花柱疤。完整果皮幾乎沒有通量。
Q3. 為什麼夜間反而是風險時段?
溫室番茄量測顯示質外體水流進入果實的峰值落在夜間,白天正午莖果梯度被壓縮、果實甚至向外失水。夜間果溫低、勁度高而延展性低,卻要承接最大體積增量。
Q4. 鈣肥或鉀肥可不可以取代農藥,用來防治裂果?
不行。肥料不是農藥。本篇只寫營養角色,不宣稱防治裂果,也不能直接取代用藥或栽培管理。鈣的證據落在細胞壁交聯,鉀落在滲透調節與糖分運移,都屬營養範疇。
Q5. 果皮已經破裂的果實,接下來該注意什麼?
就力學與水分而言,破裂處形成機械傷口與失水面,蒸散路徑被打開,果實失重加快。後續衛生與貯運處理不屬本篇範圍。
Q6. 日夜溫差大的季節,操作順序怎麼排比較合理?
先處理果面乾燥再處理給液。清晨等水膜蒸發後再啟動灌溉;正午降低單次給液量;午後提早收灌,壓低夜間起點含水量;養分節奏往膨大早期前移。
📚 參考來源
國際技術與學術文獻
- Benítez, J.J., Guzmán-Puyol, S., Vilaplana, F., et al., 2021. Mechanical Performances of Isolated Cuticles Along Tomato Fruit Growth and Ripening. Frontiers in Plant Science, 12, 787839. — 角質層模數與破裂應變
- Brüggenwirth, M. & Knoche, M., 2016. Factors Affecting Mechanical Properties of the Skin of Sweet Cherry Fruit. Journal of the American Society for Horticultural Science, 141(1), 45–53. — 果皮模數與果溫效應
- Winkler, A., Grimm, E. & Knoche, M., 2019. Sweet Cherry Fruit: Ideal Osmometers? Frontiers in Plant Science, 10, 164. — 吸水流率與滲透勢
- Grimm, E., Hahn, J., Pflugfelder, D., et al., 2019. Localized bursting of mesocarp cells triggers catastrophic fruit cracking. Horticulture Research, 6, 79. — 微裂隙入水與局部爆破
- Schumann, C., Sitzenstock, S., Erz, L., et al., 2020. Decreased deposition and increased swelling of cell walls contribute to increased cracking susceptibility of developing sweet cherry fruit. Planta, 252, 96. — 壁材沉積落後於鮮重
- Athoo, T.O., Khanal, B.P. & Knoche, M., 2021. Low cuticle deposition rate in 'Apple' mango increases elastic strain, weakens the cuticle and increases russet. PLOS ONE, 16(10), e0258521. — 沉積速率與彈性應變
- Chang, B.-M. & Keller, M., 2021. Cuticle and skin cell walls have common and unique roles in grape berry splitting. Horticulture Research, 8, 168. — 厚度不等於承力強度
- Hurtado, G. & Knoche, M., 2023. Detached, wetted strawberries take up substantial water in the calyx region. Scientific Reports, 13(1), 1–14. — 萼片區的果面吸水
- Hurtado, G. & Knoche, M., 2023. Microcracking of strawberry fruit cuticles: mechanism and factors. Scientific Reports, 13. — 微裂隙生成機制與因子
- Lara, I., Heredia, A. & Domínguez, E., 2019. Shelf Life Potential and the Fruit Cuticle: The Unexpected Player. Frontiers in Plant Science, 10, 770. — 角質層組成與力學
- Guichard, S., Gary, C., Longuenesse, J.J. & Leonardi, C., 1999. Water Fluxes and Growth of Greenhouse Tomato Fruits Under Summer Conditions. Acta Horticulturae, 507, 223–230. — 日夜水流與果實水勢
- Winkler, A., Bunger, P., Morales Lang, P., et al., 2024. Mode of Action of Calcium in Reducing Macrocracking of Sweet Cherry Fruit. Journal of the American Society for Horticultural Science, 149(2), 61–74. — 鈣與細胞壁力學量
- Sánchez, E. & Butzler, T., 2026. Why Are My Tomatoes Cracking and What Can I Do About It? Penn State Extension. — 乾濕驟變與果皮變弱

