




商品詳情
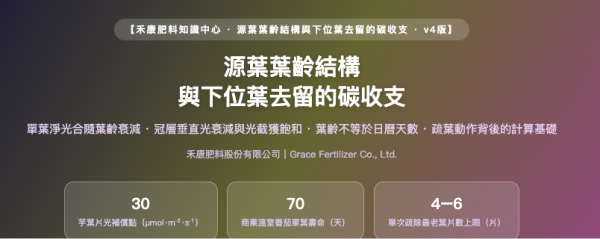
源葉葉齡結構
與下位葉去留的碳收支
單葉淨光合隨葉齡衰減 · 冠層垂直光衰減與光截獲飽和 · 葉齡不等於日曆天數 · 疏葉動作背後的計算基礎
禾康肥料股份有限公司|Grace Fertilizer Co., Ltd.
⏱ 一分鐘重點
- 疏葉的判讀基礎不是葉片外觀,而是「這片葉在現在的受光量下還能不能淨輸出同化物」。同一個動作,換一本計算基礎就換一個答案。
- 冠層深處光量下降,比葉片變老更能解釋單葉光合能力的落差;遮蔭幾天就足以把成熟葉的光合上限拉低 (Trouwborst et al., 2011)。
- 以最底層葉的每週光積分當門檻,疏葉次數比慣行少 35–43%,留葉數反而更多 (Kim & Kubota, 2025)。
- 葉齡是生理時間,不是日曆天數,也不是節位序號;跨物種不給通則,須逐列標明物種與基準。
- 台灣情境常見誤區:為通風一次把下位葉疏到見土,源端葉面積與光截獲同時掉,落果與果實偏小的風險反升。
- 源端供應要穩,先顧鉀位與鈣位:甜鉀多、禾康鈣強只寫營養角色,不宣稱延緩葉片衰老。
葉齡是生理時間:衰減曲線怎麼讀
同一株上第 8 節與第 18 節的葉片即使外觀相近,淨光合能力也可能差一截。問題在於「葉齡」被當成日曆天數在用,而它是光、溫與養分再移轉堆出的生理時間。
單葉淨光合速率隨葉齡不是直線下坡:葉片展開後先爬到高原期,維持一段時間,再進入衰減段。芋葉片在 500 μmol·m⁻²·s⁻¹ 光量下的量測顯示,葉齡 7 天約 13 μmol CO₂·m⁻²·s⁻¹,14 天略降為 12,21 至 28 天回到 13,到 35 天才落到 11(蕭政弘等,2014)。曲線的意義是:中段波動不足以當依據,要抓的是進入衰減段後那一段。
光系統的保護能力也跟著走:較老的葉片對光抑制較敏感,非光化學淬滅的誘導動力學與年輕葉不同 (Bielczynski et al., 2017)。老葉在強光突襲時更吃虧,冬季轉春的放光時段最明顯。
| 物種/對象 | 量測基準 | 葉齡或位置 | 單葉表現 | 出處 |
|---|---|---|---|---|
| 芋 | 500 μmol·m⁻²·s⁻¹ 下淨光合 | 葉齡 7 天 | 約 13 μmol CO₂·m⁻²·s⁻¹ | 蕭政弘等,2014 |
| 芋 | 同上 | 葉齡 14 天 | 約 12 | 同上 |
| 芋 | 同上 | 葉齡 35 天 | 約 11 | 同上 |
| 芋 | 文獻回顧(位置效應) | 下位葉/上位葉 | 光合可持續 40–45 天/55–80 天 | 同上 |
| 番茄 | 商業栽培觀察 | 單葉壽命 | 約 70 天 | Trouwborst et al., 2011 |
上表基準不同、不可跨列換算:物種、生育期、量測光量與氣體交換條件都不同,只能並列參照。跨物種葉齡天數不給通則,請以自家棚實測為準。
冠層垂直光衰減:下位葉拿到多少光
下位葉去留,一半答案寫在它頭上那幾層葉子裡:光被逐層截走,到底層剩多少,決定它在賺或在賠。
冠層對光的截獲隨葉面積指數上升而增加,但幅度遞減並趨近飽和;過了飽和點再疊葉面積,多出的葉子拿到的光已接近底噪 (Marcelis et al., 1998)。衰減陡緩可用消光係數描述:溫室番茄量測中,無補光時消光係數 1.53,加棚內補光後降到 0.64 (Kim & Kubota, 2025)。同一葉面積指數下,消光係數大的冠層底部更暗,下位葉更早失去貢獻能力。
更關鍵的是,冠層深處單葉光合能力的落差主要不是葉子老了造成的。番茄冠層量測指出,冠層內光量下降才是最重要因子;把成熟葉遮到正常光量的 25%,幾天內光合上限與葉綠素含量就掉下來 (Trouwborst et al., 2011)。以三維虛擬冠層配合光線追蹤分析溫室胡瓜,生化限制與光限制也是限制全株光合的最主要因子 (Chen et al., 2014)。
把冠層切四層看更好操作:頂層新葉接近棚內最高光量,限制在蒸散與氣孔,不列名單;中層成熟葉接近光飽和點,限制在生化能力,是主力源葉;中下層光量明顯遞減、光限制上升,列觀察名單並量週光積分;最底層常低於光補償點,以光限制為主,達門檻才疏。四層的分界線不是固定節位,而是隨季節與補光設定上下移動。
單葉淨貢獻帳:留或不留怎麼算
把前兩章接起來,就是一本可逐葉算的帳。三個欄位都隨葉齡與冠層位置移動,所以留或不留看的不是外觀,而是這三項的相對大小。
第一項由該葉層位的光量與該葉齡光合能力相乘而來;後兩項隨溫度、乾物重與葉齡變動。第一項降到與後兩項相等時,該葉落在光補償點上;再往下即從淨輸出同化物轉為淨消耗。芋葉片量測給出光補償點 30 μmol·m⁻²·s⁻¹、光飽和點 1,000 μmol·m⁻²·s⁻¹、暗呼吸 −3.5 μmol·m⁻²·s⁻¹(蕭政弘等,2014)。溫室番茄以最底層葉的光補償點作門檻,實測 32 ± 11 μmol·m⁻²·s⁻¹,換算週光積分約 11.3 mol·m⁻²·week⁻¹ (Kim & Kubota, 2025)。
維持呼吸最容易被估歪。番茄乾物生產的模擬與實測比對顯示,低光量與大乾重時維持呼吸可能被高估,這也是模式低估商業棚乾物生產的主因之一 (Heuvelink, 1995)。陰天久、植株又大的時期,「這片葉已經在賠」的結論要更保守。
這本帳是逐葉的,但決策是整株的。番茄源庫互動實驗顯示,庫端需求變化會牽動全株乾物生產,不是源端單方面決定 (Heuvelink & Buiskool, 1995)。同一片葉在重果期與果後期,答案可以不一樣。
反作用對照:五個越做越糟的疏葉做法
本章是全篇樞紐。五列都是田間常見、乍看合理的做法,但換到碳收支的計算基礎上看,反作用大於作用。
| 做法 | 為什麼反而更糟 | 替代做法 |
|---|---|---|
| 一次疏掉大量下位葉 | 葉面積指數與光截獲同時下降;高線胡瓜試驗顯示摘葉略增落果、延緩發育而減少節位,使果數與產量下滑 (Elings & Janse, 2020) | 少量多次:每 10–14 天一輪,單次 4–6 片最老葉為上限 (Hochmuth, 2012) |
| 看到葉片轉黃才疏 | 轉黃代表養分再移轉已進行一段時間,淨輸出早在外觀變化前轉負,部分氮已回收不回來 (Havé et al., 2017) | 以該葉層受光量(週光積分)當門檻,不以顏色當門檻 |
| 只按節位數固定疏幾片 | 節位序號不等於生理葉齡;季節、光量與溫度都會改變一片葉抵達光補償點的時間 | 固定量測最低葉層光量,依季節滾動調整;此法疏葉次數較慣行少 35–43% (Kim & Kubota, 2025) |
| 為求通風把下位葉疏到見土 | 冠層底部光環境與微氣候雖改變,源端葉面積一併減少,剩餘葉的維持呼吸占比上升,淨同化總量更吃緊 | 保留仍在光補償點以上的葉層;通風以結構與開窗處理,不靠犧牲源葉 |
| 疏葉後立刻加重追肥 | 源端葉面積剛變小,碳端供應未回復;此時加重氮肥易把同化物拉向新葉與莖,生殖端更吃緊 (Heuvelink & Buiskool, 1995) | 維持原施肥節奏,先穩鉀位與鈣位,待新葉接手再調 |
葉齡結構的作業節奏與源端供應
把單葉的帳加總到整株,就是「葉齡結構」:各葉齡的葉面積怎麼分佈。管好它,疏葉才會從被動收尾變成主動的節奏。
冠層同化總量可寫成:Σ(各葉層受光比例 × 該葉層葉面積 × 該葉齡的單葉光合能力)。這式子說明:只補葉面積不看層位沒用,只看層位不看葉齡也不夠,三者得一起排。
氮在冠層裡的配置是這分佈的內部機制。理論與實測都指出,氮往受光高的葉層配置,冠層同化總量會高於均勻分佈 (Hikosaka, 2016);小麥營養生長期冠層也量到垂直氮分佈隨光環境調整 (Dreccer et al., 2000)。葉片轉換可視為動態系統,產生、老化與脫落受源庫平衡調節,而非單純由年齡決定 (Hikosaka, 2005)。下位葉不是被時間淘汰,是被光與養分再配置淘汰的。
源端營養的角色只到「把該葉層光合能力撐在它受光量該有的水準」。鉀位值得盯:設施小果番茄鉀肥試驗量到葉片鉀含量 2.78–3.45%,低於日本所定番茄葉片鉀適量基準 4.0–5.0%(戴振洋等,2023)。這是養分狀態的判讀依據,只寫營養角色、不宣稱延緩葉片衰老。
| 季節/光環境 | 最底層葉受光 | 葉齡結構傾向 | 疏葉節奏判讀 |
|---|---|---|---|
| 冬季低光期 | 常低於光補償點 | 老葉比例偏高 | 節奏放慢,少量多次 |
| 棚內加補光 | 消光係數下降、底層變亮 | 可承載較多葉層 | 門檻放寬,留葉數可提高 |
| 春季放光期 | 變動大、易強光突襲 | 老葉對光抑制較敏感 | 先疏低於門檻者,避免大疏 |
| 夏季高溫期 | 光量足、呼吸支出升高 | 葉齡推進加快 | 依光量門檻滾動,不看外觀 |
禾康方案精準對接
以下對接的是「源端葉片的營養狀態」,不是疏葉手法本身,也不涉及防治。各品項只並列不比較、不作機型/品系選購推薦,規格與供應請洽官網產品頁;敘述只寫營養角色、不宣稱延緩葉片衰老。
🌱 簡易版(新手速成)
① 先量光,不先看葉
每週同一時間、同一位置量最低葉層光量,累成一個週數字。這數字才是名單入口,葉片顏色不是。
② 建自己的門檻
別抄別人家的天數。從實測光補償點往上推,定出自家棚的週光積分門檻,低於才列入名單。
③ 少量多次
每 10–14 天一輪,單次以 4–6 片最老葉為上限。一次大疏會把葉面積與光截獲一起拉掉。
④ 施肥節奏不跟著動
疏葉前後維持原節奏,先穩鉀位與鈣位,等新葉接手再調。加重氮肥易把同化物拉離生殖端。
常見問答
Q1. 葉齡到底怎麼算?用天數可以嗎?
天數只能當粗估。葉齡是光、溫與養分再移轉堆出的生理時間,同一節位在冬季與夏季抵達光補償點的天數不同。跨物種更不給通則:芋與番茄的量測基準不同,不可跨列換算。務必以自家棚光量實測為主軸。
Q2. 疏葉可以取代農藥或防治作業嗎?
不行。疏葉是源端碳收支的管理動作,不是防治手段,也不能取代任何用藥或衛生管理程序。本篇只寫到冠層內微氣候差異與光量不足為止,不提供防治效果數據。相關作業請依官方公告與標示辦理。
Q3. 一次要疏幾片才算安全?
共識是少量多次。溫室番茄作業建議每 10–14 天一輪,單次 4–6 片最老葉為上限 (Hochmuth, 2012)。高線胡瓜試驗也顯示摘葉過量會降低葉面積指數與光截獲,使果數與產量下滑 (Elings & Janse, 2020)。
Q4. 下位葉黃掉是不是代表缺肥?
不一定。生理性衰老本身伴隨養分再移轉,氮與其他可移動養分會往新葉搬 (Havé et al., 2017),黃化可能是正常再配置。要判讀養分狀態請送葉片分析,如葉片鉀含量可與適量基準對照(戴振洋等,2023)。
Q5. 疏葉之後要不要補肥、補得多一點好嗎?
不建議加重。源端葉面積剛縮小,碳端供應未回復,加重氮肥易把同化物拉向新葉與莖,生殖端更吃緊 (Heuvelink & Buiskool, 1995)。維持原節奏、先穩鉀位與鈣位,待新葉接手再調。
📚 參考來源
國際技術與學術文獻
- Trouwborst, G., Hogewoning, S.W., Harbinson, J., van Ieperen, W., 2011. The influence of light intensity and leaf age on the photosynthetic capacity of leaves within a tomato canopy. Journal of Horticultural Science and Biotechnology, 86(4), 403-407. — 光量比葉齡更能解釋落差
- Chen, T.W., Henke, M., de Visser, P.H.B., Buck-Sorlin, G., Wiechers, D., Kahlen, K., Stützel, H., 2014. What is the most prominent factor limiting photosynthesis in different layers of a greenhouse cucumber canopy? Annals of Botany, 114(4), 677-688. — 冠層分層的限制因子排序
- Kim, C., Kubota, C., 2025. Data-driven leaf pruning based on weekly light integral: importance of dynamic defoliation strategy. Frontiers in Plant Science, 16, 1651174. — 以週光積分設疏葉門檻
- Heuvelink, E., 1995. Dry matter production in a tomato crop: measurements and simulation. Annals of Botany, 75(4), 369-379. — 維持呼吸在低光期易高估
- Heuvelink, E., Buiskool, R.P.M., 1995. Influence of sink-source interaction on dry matter production in tomato. Annals of Botany, 75(4), 381-389. — 庫端需求回頭牽動源端
- Havé, M., Marmagne, A., Chardon, F., Masclaux-Daubresse, C., 2017. Nitrogen remobilization during leaf senescence: lessons from Arabidopsis to crops. Journal of Experimental Botany, 68(10), 2513-2529. — 衰老期氮再移轉的路徑
- Hikosaka, K., 2016. Optimality of nitrogen distribution among leaves in plant canopies. Journal of Plant Research, 129(3), 299-311. — 氮往高光葉層配置更划算
- Hikosaka, K., 2005. Leaf canopy as a dynamic system: ecophysiology and optimality in leaf turnover. Annals of Botany, 95(3), 521-533. — 葉片轉換是動態系統
- Dreccer, M.F., van Oijen, M., Schapendonk, A.H.C.M., Pot, C.S., Rabbinge, R., 2000. Dynamics of vertical leaf nitrogen distribution in a vegetative wheat canopy. Impact on canopy photosynthesis. Annals of Botany, 86(4), 821-831. — 垂直氮分佈的動態量測
- Elings, A., Janse, J., 2020. Optimizing production by varying leaf number and stem density in high-wire cucumber. Acta Horticulturae, 1296, 349-356. — 摘葉過量壓低光截獲與果數
- Bielczynski, L.W., Łącki, M.K., Hoefnagels, I., Gambin, A., Croce, R., 2017. Leaf and plant age affects photosynthetic performance and photoprotective capacity. Plant Physiology, 175(4), 1634-1648. — 老葉對光抑制較敏感
- Marcelis, L.F.M., Heuvelink, E., Goudriaan, J., 1998. Modelling biomass production and yield of horticultural crops: a review. Scientia Horticulturae, 74(1-2), 83-111. — 光截獲隨葉面積趨近飽和
- Hochmuth, G.J., 2012. Production of Greenhouse Tomatoes—Florida Greenhouse Vegetable Production Handbook, Vol 3. HS788/CV266, UF/IFAS Extension. — 少量多次的疏葉作業規範

